发布日期:2026-09-30浏览次数:103来源:蓝景科信
长期以来,植物表观转录组领域的目光几乎全部聚焦m⁶A甲基化,然后数百种其他RNA修饰含量虽低却也在植物中发挥核心功能。最近发表于《Nature Plants》的重磅综述“Emerging roles of non-m⁶A mRNA modifications in plants”彻底打破这一固有认知:除m⁶A外,m⁵C、ac⁴C、假尿嘧啶Ψ、m¹A、m⁷G、2′O-Nm六大类非m⁶A修饰遍布植物mRNA,独立调控开花、根系发育、光合作用、高温/低温/病害胁迫响应,甚至直接决定水稻、小麦等作物产量。
一、什么是非m⁶A mRNA修饰?一张图看懂6类修饰全貌
真核mRNA化学修饰构成表观转录组,是基因转录后调控核心层级。RNA上已发现超170种化学修饰,m⁶A研究最透彻,但近年大量证据证明非m⁶A修饰拥有独立、不可替代的调控功能。 植物中主流非m⁶A内部mRNA修饰:m⁵C(5-甲基胞嘧啶)、ac⁴C(N⁴-乙酰胞苷)、Ψ(假尿嘧啶)、m¹A、m⁷G、2′O-Nm等所有修饰均由三类蛋白协同调控:Writer(写入酶)、Reader(识别蛋白)、Eraser(擦除酶)。非m⁶A修饰全面调控mRNA可变剪接、稳定性、翻译、长距离转运,最终决定植物发育、逆境适应。
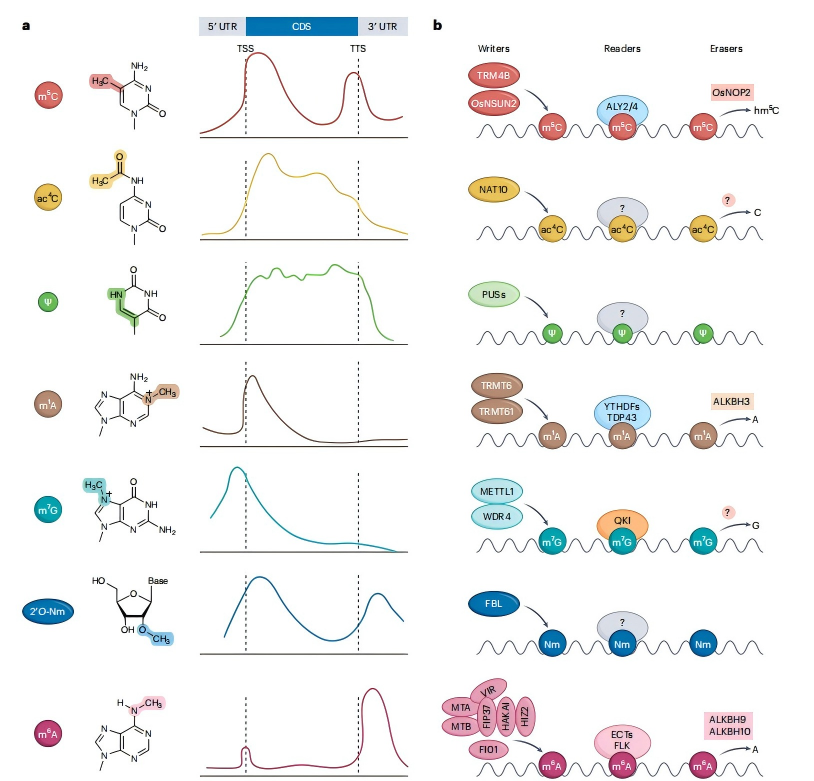
Figure.1.a展示了不同修饰(m⁵C、ac⁴C、Ψ、m¹A、m⁷G、2‘O-Nm)的化学结构及它们在转录本上的偏好分布。m⁵C、ac⁴C集中在编码区;m¹A在起始密码子后出现尖锐峰值;m⁷G偏向5'端;Ψ均匀铺满CDS;2′O-Nm呈现5'/3'UTR双峰分布。对比参考m⁶A典型富集于3'UTR,与所有非m⁶A分布模式完全区分。
Figure.1.b则揭示了这些修饰的动态调控网络:所有RNA修饰都遵循经典的“写入器”(writer)、“擦除器”(eraser)和“阅读器”(reader)调控模式。
m⁵C(Writer:TRM4B/OsNSUN2;Reader:ALY2/4;特殊擦除蛋白OsNOP2),ac⁴C、Ψ、2′O-Nm目前未鉴定到明确识别蛋白与擦除蛋白,是当下科研热点缺口。
二、m⁵C/ac⁴C/Ψ是植物中功能最明确的三类修饰,全方位掌控植物生长与抗逆
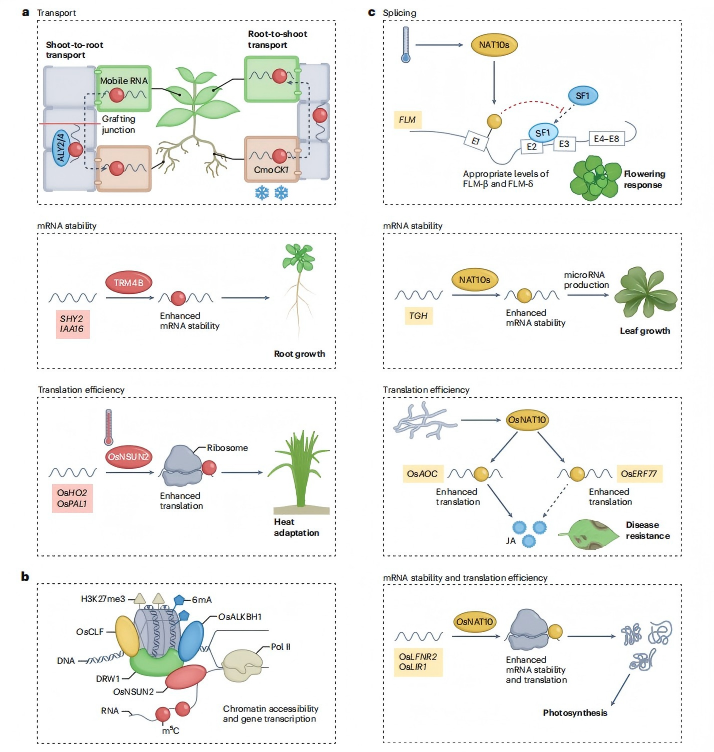
Fig.2、Fig.3完整可视化m⁵C、ac⁴C、Ψ三类修饰的生理功能,覆盖RNA转运、可变剪接、mRNA稳定性、翻译四大核心转录后调控过程。
1. m⁵C(5-甲基胞嘧啶):兼顾长距离RNA运输、耐热、增产、多层表观互作
调控根系发育:m⁵C标记mRNA依靠ALY2/4蛋白完成嫁接长距离转运;TRM4B介导的m⁵C修饰提升SHY2、IAA16基因稳定性,促进拟南芥根系伸长;
低温信号通路:南瓜低温胁迫下,m⁵C与m⁶A协同让CmoCK1 mRNA从根系转运至地上,维持低温存活;
高温耐热:水稻热胁迫激活OsNSUN2,给光合、解毒基因添加m⁵C,大幅提升蛋白翻译效率,增强高温适应;
增产黑科技:敲除水稻OsNOP2提升全基因组m⁵C水平,碳氮代谢通路翻译全面上调,正常、高温、盐碱环境下水稻产量同步提升,小麦、番茄同源改造同样增产;
多层表观联动:蛋白DRW1作为分子桥梁,同时串联m⁵C RNA修饰、组蛋白H3K27me3、DNA 6mA甲基化,共同调控染色质开放程度,改良水稻耐盐性。
2. ac⁴C(N⁴-乙酰胞苷):唯一乙酰化修饰,调控温敏开花、光合、抗病
ac⁴C是mRNA独有的乙酰修饰,丰度极低但功能关键,由NAT10家族酶专一催化:
温度感知开花通路:低温诱导NAT10修饰开花关键基因FLM,调控可变剪接,平衡开花抑制/促进转录本比例;突变体低温下严重晚花;
光合作用全局调控:ac⁴C修饰光捕获、叶绿体发育相关基因,同时增强mRNA稳定性与翻译;拟南芥、水稻NAT10突变体光合效率显著下降,该机制在大豆、番茄、草莓多物种保守;
水稻抗稻瘟病:稻瘟菌侵染激活OsNAT10,JA抗病通路基因OsACO、OsERF77的ac⁴C修饰上调,促进茉莉酸合成,显著提升植株抗病能力;
叶片发育:稳定TGH mRNA,保障miRNA正常生成,维持叶片形态建成。
3. Ψ假尿嘧啶:丰度最高的非m⁶A修饰,全局调控翻译效率
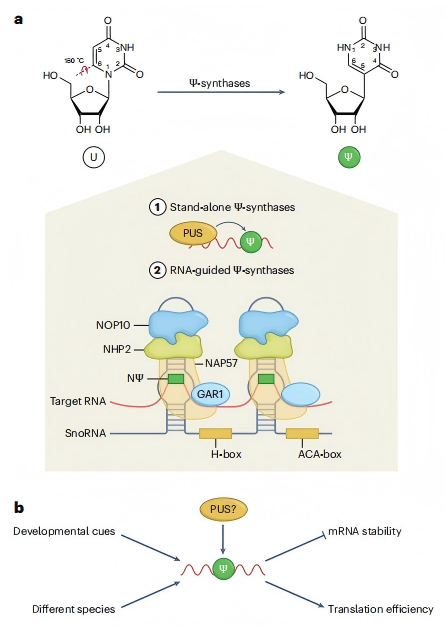
Ψ由PUS家族酶催化尿苷异构化生成,植物拥有20–22个PUS同源基因,组织、胁迫条件下表达高度差异化:
全局规律:Ψ修饰与mRNA稳定性负相关,但显著提升翻译效率,5'UTR区域的Ψ翻译激活效应最强;
物种特异性:水稻、拟南芥、玉米修饰保守基序完全不同,修饰位点高度组织特异性;
待挖掘潜力:大量PUS基因响应干旱、高温、病原菌胁迫,但单个PUS对mRNA Ψ的靶向功能几乎空白,是下一个热门研究方向。
三、冷门修饰m¹A/m⁷G/2′O-Nm:待解锁的全新调控维度
除三大核心修饰外,综述还梳理了三类已在植物中检出、但机制几乎空白的RNA修饰:
m¹A(N¹-甲基腺苷):水稻、矮牵牛CDS起始区富集,TRMT6/TRMT61复合体负责写入,突变会造成叶片发育畸形;
m⁷G(内部N⁷-甲基鸟苷):水稻5'UTR富集,病原菌侵染会大幅改变92个转录本修饰水平,潜在参与生物胁迫响应;
2′O-Nm(核糖甲基化):调控RNA-蛋白互作、维持RNA稳定,水稻中呈5'/3'UTR双峰分布,读写擦全套蛋白均未鉴定。
四、三大类检测技术,搞定低丰度非m⁶A修饰图谱
受限于植物mRNA中非m⁶A修饰丰度极低,常规测序很难精准捕捉,综述系统汇总全部可用检测方案:
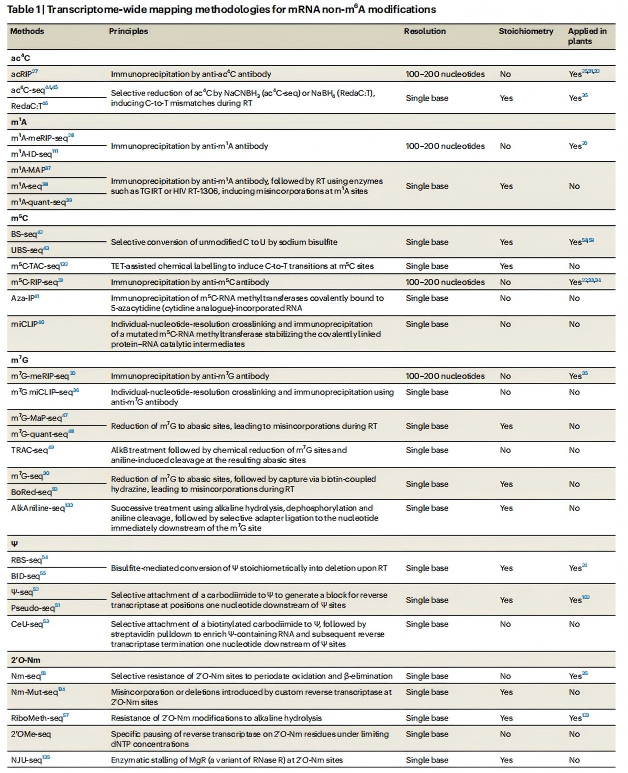
①抗体富集测序(RIP-seq系列)
原理:修饰特异性抗体抓取RNA后二代测序;优势:操作简单、入门门槛低;短板:分辨率仅100–200nt,无法定量修饰比例,高度依赖抗体质量。
②化学转化单碱基测序(BS-seq/ac⁴C-seq/BID-seq等)
利用修饰核苷独特化学反应,诱导逆转录错配、缺失,实现单碱基分辨率,可精准定量修饰化学计量比,目前多数已在水稻、拟南芥中成熟应用,是当前主流高精度手段。
③纳米孔直接RNA测序(Nanopore DRS)
第三代单分子黑科技,无需反转录、不用化学标记,直接测天然RNA;修饰会改变离子电流信号,通过机器学习算法一次性同时检测m⁶A、m⁵C、ac⁴C、Ψ等6种修饰;还能区分不同可变剪接异构体的修饰差异,是未来技术主流。
辅助手段:LC-MS质谱可全局定量总修饰丰度,但无法定位具体基因位点,常与测序技术互补使用。
五、修饰间交叉互作:RNA修饰不是单打独斗
综述提出关键新概念:各类RNA修饰不存在独立调控,而是形成复杂调控网络:
同一条mRNA可携带多种修饰协同发挥功能:南瓜CmoCK1的m⁵C+m⁶A共同促进低温下长距离转运;水稻大量转录本同时携带m⁶A/m⁵C/ac⁴C,协同调控RNA结构、稳定性与翻译;
修饰共享识别蛋白:动物中m⁶A经典阅读蛋白YTHDF可识别m¹A,IGF2BP3同时结合m⁶A、m⁷G,植物同源蛋白大概率存在相似交叉识别机制,等待验证。
结语
长久以来,我们困在m⁶A的单一研究框架里,而这篇《Nature Plants》综述为整个植物表观转录组领域打开了全新赛道。m⁵C、ac⁴C、Ψ等非m⁶A修饰不再是小众冷门,而是连接植物发育、环境适应与作物遗传改良的核心调控枢纽。
从基础科研角度,ac⁴C、Ψ的读写擦蛋白、单碱基编辑工具仍是巨大研究空白,蕴藏大量可发表课题;从产业育种角度,RNA表观修饰为培育高产、耐高温、抗病的优质作物提供了无转基因、精准微调的全新解决方案,具备巨大落地价值。
后续我们会持续更新:非m⁶A修饰实验方案、纳米孔多修饰测序数据分析流程、水稻/拟南芥基因编辑实操案例,感兴趣的科研同行、育种从业者可以持续关注,欢迎留言交流你正在研究的RNA修饰方向